|
泽泻(Alisma plantago-aquatica L.)是传统中药材,其块茎入药已有两千多年历史。现代药理学研究表明,泽泻提取物具有保肾、保肝、降血糖、降血脂、抗炎、抗癌及抗病毒等多种生物活性。原萜烷型四环三萜(如泽泻醇A/B/C及其乙酰化产物)是泽泻的主要活性成分。23-乙酰泽泻醇B在抗SARS-CoV-2方面表现尤为突出,不仅能有效抑制病毒的入侵和复制,其细胞毒性也低于前体泽泻醇B,是颇具潜力的抗病毒候选化合物。然而,23-乙酰泽泻醇B在植物体内含量很低(约占干重0.1%),过度依赖开采野生资源极易引发生态破坏,满足泽泻的大量需求是推动其进一步应用和发展亟待解决的问题。
近日,上海辰山植物园/中国科学院上海辰山植物科学研究中心赵清研究员团队与四川大学张阳教授团队在《SCIENCE CHINA Life Sciences》(中科院1区TOP,IF=9.6)在线发表题为“BAHD acyltransferase ApAT2 catalyzes the acetylation of protostane-type tetracyclic triterpenes in Alisma plantago-aquatica”的研究论文。该研究在泽泻中鉴定到一个BAHD酰基转移酶ApAT2,揭示了其特异催化原萜烷型四环三萜C23位羟基乙酰化的分子机制。研究团队还构建了大肠杆菌半生物合成平台,实现了将丰度较高的泽泻醇B转化为活性更好、细胞毒性更低的23-乙酰泽泻醇B,为这一重要中药活性成分的绿色生产提供了新策略。
研究团队首先对泽泻的花、叶、块茎和根进行了代谢物的提取和检测分析。结果发现泽泻醇B与23-乙酰泽泻醇B在空间分布上高度一致,但前者的含量远高于后者,暗示乙酰化是合成通路中的一个限速步骤。为挖掘关键酰基转移酶基因,该研究构建了泽泻的全长转录组数据集。通过基因共表达分析策略,以泽泻已知的原萜烷型四环三萜环化酶基因ApPDS为诱饵,在转录组中筛选BAHD酰基转移酶基因家族成员,结合系统发育分析,初步锁定了8个ApATs候选基因(图1)。
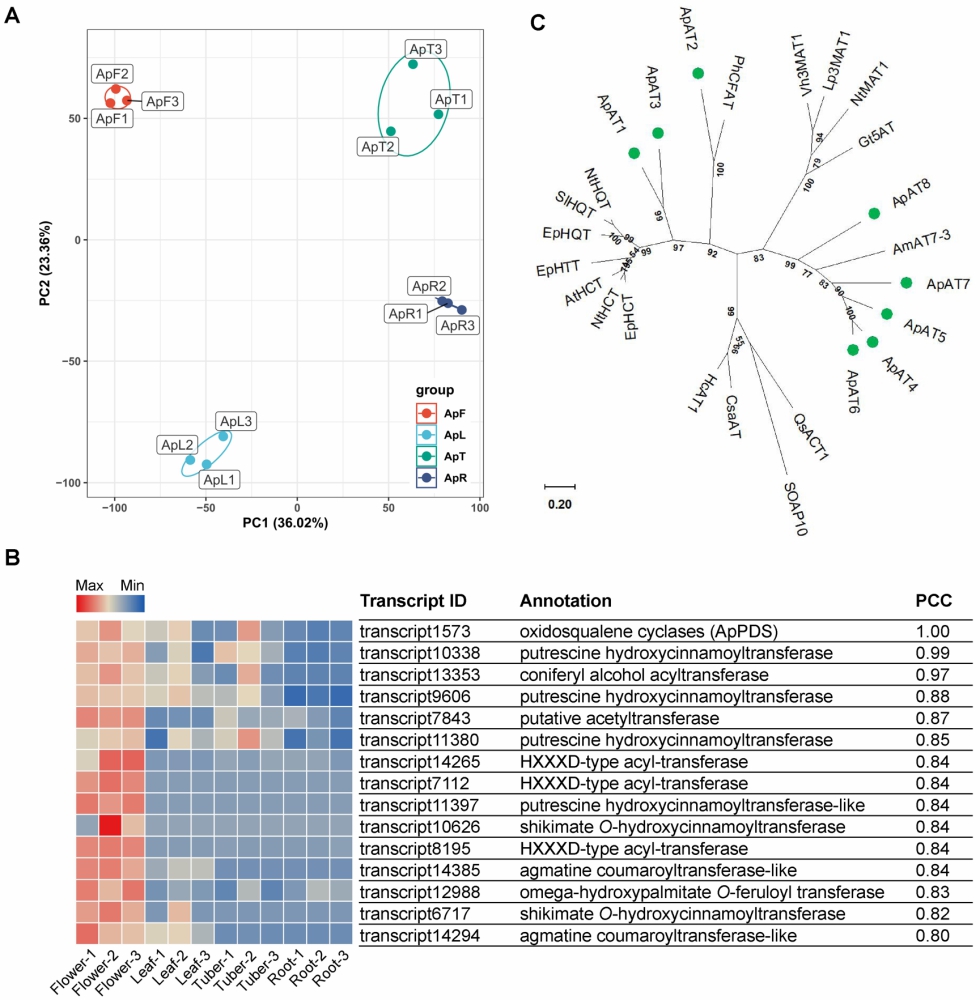
图1. 参与乙酰化泽泻醇生物合成的候选基因的生物信息学分析
酶活实验表明,仅有ApAT2能够以乙酰辅酶A为酰基供体,催化泽泻醇B和泽泻醇C分别生成23-乙酰泽泻醇B和23-乙酰泽泻醇C(图2)。酶动力学参数显示,ApAT2对泽泻醇B的催化效率是对泽泻醇C的3.92倍,但ApAT2对泽泻醇A无催化活性。
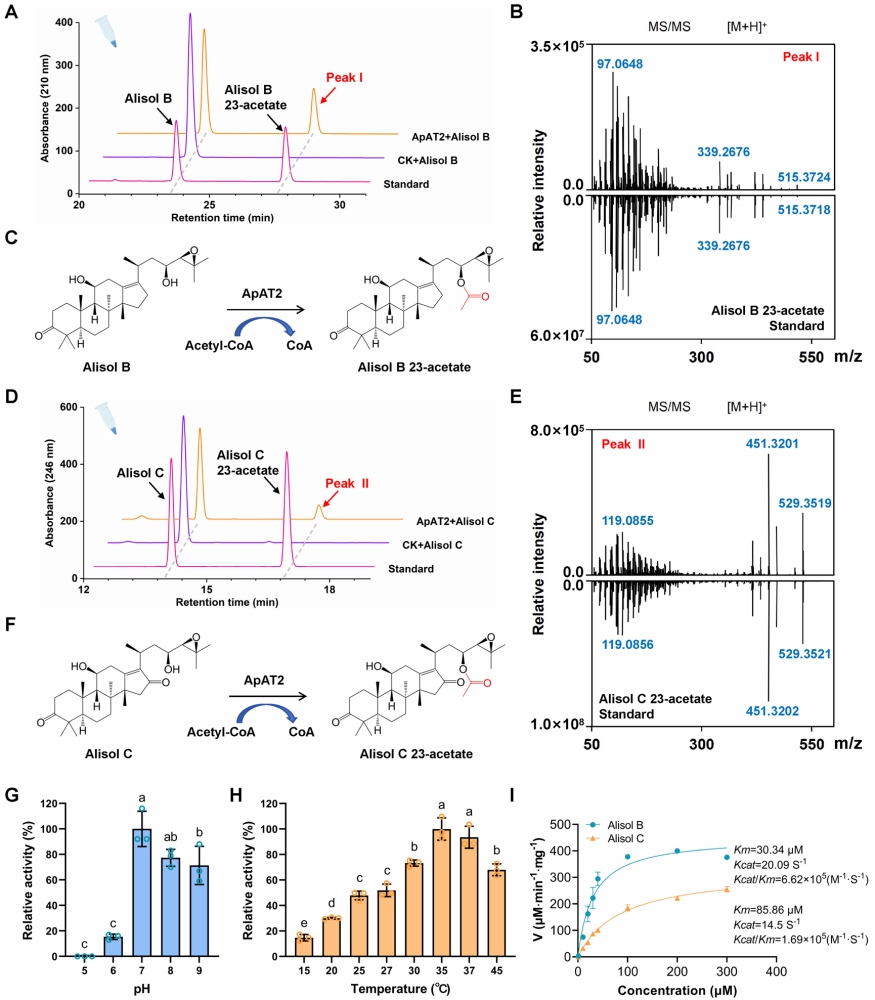
图2. ApAT2的体外酶活分析
为探究ApAT2的底物选择机制,研究团队利用AlphaFold2预测了其三维结构并进行分子对接与定点突变(图3)。研究发现ApAT2活性口袋中H158(位于保守HXXXD基序)作为催化碱基,负责夺取底物C23羟基质子以启动亲核攻击,其突变会导致酶活性完全丧失。而第412位的甲硫氨酸(M412)是ApAT2识别底物的关键位点——其形成的疏水微环境能特异性识别泽泻醇B和泽泻醇C中的环氧基团,却无法容纳泽泻醇A中的亲水性邻二羟基。系统发育分析揭示了一个有趣的进化现象:ApAT2并未与已知的三萜酰化酶(如催化葫芦烷型三萜的CsaAT、催化皂苷的AmAT7-3等)聚类,而是与催化简单醇类底物的PhCFAT(矮牵牛松柏醇乙酰转移酶)形成独立分支。ApAT2对葫芦素IIb(葫芦烷型)、黄芪甲苷IV(环阿屯烷型)及松柏醇均无催化活性,表明其可能通过谱系特异性演化,在BAHD家族中独立获得了识别原萜烷型三萜的能力(图1C)。
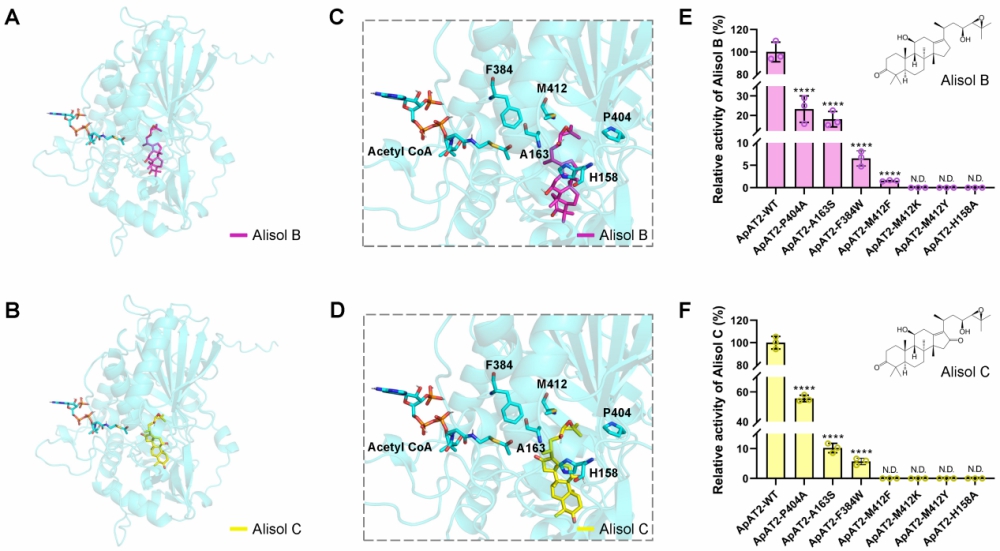
图3. 分子对接和定点突变
鉴于泽泻中泽泻醇B含量丰富,而23-乙酰泽泻醇B含量极低,研究团队还利用大肠杆菌作为宿主表达了ApAT2酶,通过直接向培养基中添加底物泽泻醇B,成功实现了向高价值产物23-乙酰泽泻醇B的一步式转化。该半合成平台省去了酶的纯化和添加辅助因子步骤,工艺简洁,具备良好的工业应用前景,为制备珍稀高价值化合物提供了一条可行路径。
上海辰山植物园/四川大学联合培养博士朱三明和上海辰山植物园崔孟颖助理研究员为论文共同第一作者,上海辰山植物园赵清研究员和四川大学张阳教授为共同通讯作者。上海辰山植物园李建戌研究员、孔羽博士、裴天林副研究员、方誉民助理研究员、柳洁助理研究员、陈秋颖硕士,四川大学付饶副研究员、王晞华博士、白峰博士后、曹洋教授、李彬博士,以及中南林业科技大学陈俊婕博士对本研究作出了重要贡献。该工作得到了国家自然科学基金,上海市自然科学基金,上海市绿化和市容管理局科研专项基金,中华人民共和国科学技术部,上海市农业农村委员会上海市科技兴农项目,中国博士后科学基金,四川省自然科学基金以及四川大学博士后交叉学科创新基金的资助。
文章链接:http://engine.scichina.com/doi/10.1007/s11427-026-3517-x
|